Hoofdstuk 5 Ontogenese
In het bovenste deel van het model zien we het biologische aspect “ontogenese” aangeduid in de rode box (zie Figuur 5.1), waarop we in dit hoofdstuk zullen focussen.
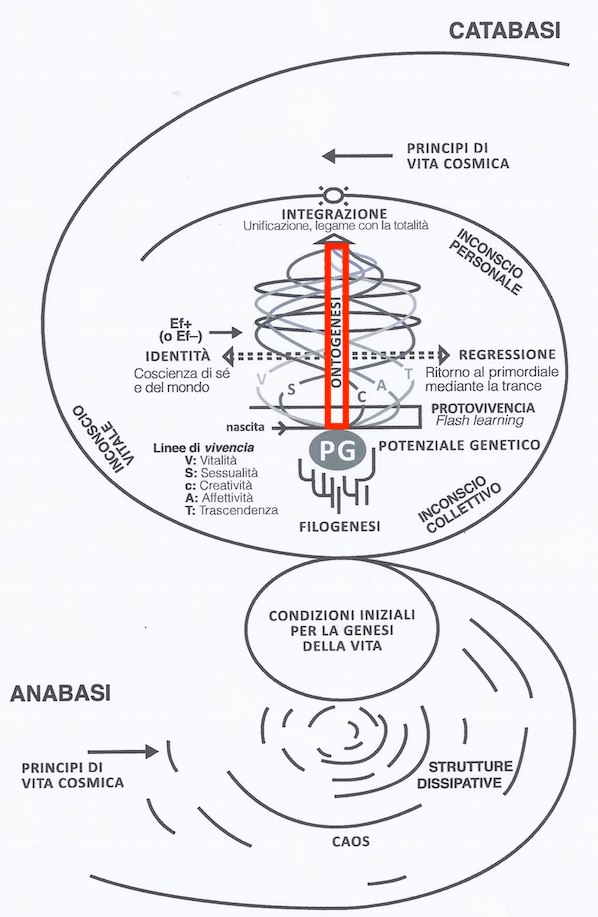
Figuur 5.1: Biodanza Model en Ontogenese
De ontogenese is de ontwikkeling van een organisme vanaf een bevruchte eicel naar het volwassen stadium totdat het uiteindelijk sterft.
Onze ontogenese begint met het genetisch potentieel dat we erven van onze ouders via hun eicel en zaadcel. De bevruchte eicel begint zich dan te delen en op een bepaald moment beginnen de cellen zich te differentiëren in verschillende weefsels. En dat terwijl al onze cellen23 hetzelfde genetisch materiaal hebben!
Onze omgeving en hoe we met onze omgeving omgaan is een andere heel belangrijke factor in onze ontwikkeling. Ons fenotype, onze waarneembare eigenschappen en kenmerken, komen voort uit de complexe wisselwerking tussen onze genomische samenstelling, ons genotype, en omgevingsfactoren.
De hoofdvraag bij ontogenese is hoe cellen van verschillende weefsels van hetzelfde organisme die dus allen dezelfde genetische code hebben, morfologisch zo verschillend kunnen zijn, en, hoe de omgeving en veranderingen in onze omgeving ons fenotype kunnen beïnvloeden.
Een belangrijk deel van het antwoord ligt in de epigenetica! En epigenetica is de ontbrekende schakel die Rolando Toro nodig had om uit te leggen hoe Biodanza een verrijkte omgeving vormt die organische en cellulaire vernieuwing, affectieve heropvoeding en het opnieuw leren van de oorspronkelijke functies van het leven induceert. Een heel interessante hypothese die Rolando op het einde van zijn leven poneerde.
In dit hoofdstuk zal ik het concept van epigenetica introduceren en bespreek ik bronnen in de wetenschappelijke literatuur die ons kunnen helpen de redenering achter Rolando’s hypothese te begrijpen. Merk echter op dat we deze verwijzingen naar de wetenschappelijke literatuur niet kunnen interpreteren als wetenschappelijk bewijs voor de rol van epigenetica in Biodanza, aangezien de epigenetische effecten van Biodanza nog niet experimenteel zijn onderzocht.
5.1 Epigenetica
Epigenetica is de studie van hoe ontwikkeling, gedrag en omgeving veranderingen kunnen veroorzaken die invloed hebben op de manier waarop we onze genen gebruiken. Hoewel epigenetische veranderingen, in tegenstelling tot mutaties, onze DNA-volgorde niet veranderen, hebben ze wel een grote invloed op hoe ons lichaam onze genen kan lezen of net niet kan lezen.
Epi betekent “bovenop” en genetica “onze genen”. En dat is letterlijk wat het betekent: een set instructies die bovenop onze genen ligt. Epigenetica werkt onder meer door middel van epigenetische merkers: kleine chemische groepen die door enzymen worden aangebracht op het DNA of op de histonen, de eiwitten waarrond het DNA gewikkeld is. Deze merkers kunnen genen makkelijker of moeilijker afleesbaar maken voor de cel.
Epigenetica heeft een grote invloed op onze biologie. Onze hersen- en spiercellen hebben bijvoorbeeld hetzelfde DNA, maar zijn totaal verschillend van vorm en functie (zie Figuur 5.2). Dit komt omdat ze een heel andere set genen gebruiken. Het verschil in de genen die ze tot expressie brengen, wordt voor een groot deel bepaald door verschillen in hun epigenoom, d.w.z. de verzameling epigenetische merkers over hun hele genoom24. Opmerkelijk genoeg worden deze epigenetische merkers ook gekopieerd wanneer een cel zich deelt, dus hersencellen blijven hersencellen en spiercellen blijven spiercellen na celdeling.
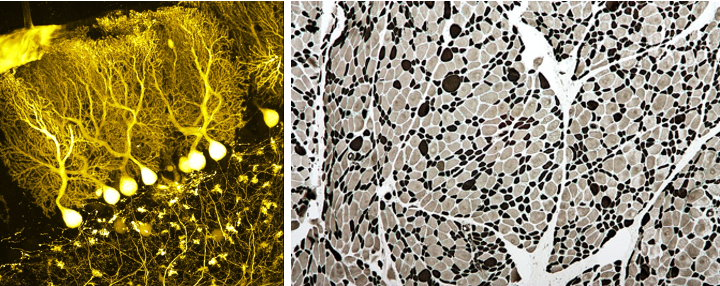
Figuur 5.2: Hersen- (links) en spiercellen (rechts) (Wikipedia: BrainsRusDC, links en Nephron, rechts).
De belangrijkste epigenetische veranderingen vinden plaats tijdens de embryonale ontwikkeling. In een bevruchte eicel zijn al onze genen min of meer toegankelijk. Maar naarmate het embryo zich ontwikkelt, differentiëren cellen zich in hersencellen, spiercellen, huidcellen, levercellen enz. Deze differentiatie gebeurt door het toevoegen of verwijderen van epigenetische merkers, en dat is het gevolg van verschillen in de concentratie van signaalmoleculen (morfogenen) over het hele embryo en van de signalen die een cel ontvangt van haar buurcellen.
Dit brengt ons bij een heel belangrijk punt van epigenetica: epigenetica wordt grotendeels beïnvloed door de omgeving. Niet alleen de naburige cellen hebben invloed op het ontwikkelende embryo, maar ook onder meer het voedsel, rookgedrag en stressniveau van de moeder. Dat wordt via haar bloedbaan doorgegeven aan de ontwikkelende foetus en kan een epigenetische invloed hebben op hoe het kind zijn genen later in het leven gebruikt. Een treffend voorbeeld komt uit Nederland: mensen die rond hun conceptie werden blootgesteld aan de hongersnood van de Hongerwinter van 1944–45, vertoonden zes decennia later minder DNA-methylatie van het groeigen IGF2 dan hun broer of zus die niet aan de hongersnood was blootgesteld (Heijmans et al. 2008). Nog interessanter voor Biodanza is dat het epigenetische proces na de geboorte blijft verdergaan. Dat is in het bijzonder zo voor onze hersenen die ons hele leven lang blijven ontwikkelen, en ook hier is de interactie met onze omgeving van vitaal belang.
Bij ratten is bijvoorbeeld aangetoond dat het verzorgen en zogen door de moeder een grote invloed heeft op de zogenaamde “hypothalamus-hypofyse-bijnier” (HPA) stress- en verdedigingsrespons van volwassen ratten (Weaver et al. 2004). Volwassen ratten, die koesterende moeders hadden als pup, gedragen zich minder angstig onder stressomstandigheden en vertonen een actiever exploratiegedrag wanneer ze in een nieuwe omgeving worden geplaatst. Dit komt door het epigenoom van de glucocorticoïde receptor (GR) in hun hippocampus dat wordt beïnvloed door het moeder-pup contact in de eerste week van hun leven. Het epigenoom van de ratten, die werden gekoesterd door hun moeder als pup, zorgt voor hogere expressieniveaus van de GR in hun volwassen leven, waarvan is geweten dat het hun HPA-stressrespons tempert (Weaver et al. 2004, 2005). Dat het om de zorg gaat en niet om de genen, bleek uit het feit dat pups van weinig zorgzame moeders die werden grootgebracht door een zorgzame pleegmoeder, hetzelfde epigenetische profiel en hetzelfde gedrag ontwikkelden als de pups van zorgzame moeders (Weaver et al. 2004). Deze bevindingen werden ook vertaald naar mensen: in post-mortem hersenweefsel van mensen die zelfmoord pleegden, vertoonden zij die als kind mishandeld waren een vergelijkbaar GR-epigenoom als de weinig verzorgde ratten, in tegenstelling tot zij die geen mishandeling hadden meegemaakt (McGowan et al. 2009). De auteurs toonden bij ratten ook aan dat deze epigenetische merkers in het volwassen brein in principe omkeerbaar zijn, al gebeurde dat in hun experiment met een chemische stof en niet door een verandering in omgeving of gedrag (Weaver et al. 2005).
Belangrijk voor Biodanza is het bewijs voor de cruciale rol van epigenetica voor leerprocessen en voor de manier waarop de expressie van onze genen door onze levensstijl wordt beïnvloed. Studies bij knaagdieren hebben bijvoorbeeld het belang aangetoond van een verrijkte omgeving, met verhoogde niveaus van multisensorische stimulatie, fysieke activiteit en sociale interacties, op hun neuroplasticiteit25 (Baroncelli et al. 2010). Er is ook aangetoond bij muizen dat een verrijkte omgeving de oxidatieve stress en ontsteking in hun hippocampus vermindert (Griñan-Ferré et al. 2016) en een jong epigenetisch landschap weet te behouden in de verouderde hippocampus26 (Zocher et al. 2021). In tweelingstudies bij mensen is een verband gevonden tussen lichaamsbeweging en epigenetische merkers die verband houden met een verminderde ontwikkeling van het metabool syndroom (Duncan et al. 2022). Deze epigenetische veranderingen werden in verband gebracht met genen waarvan bekend is dat ze betrokken zijn bij lichaamsbeweging en obesitas. Er zijn ook aanwijzingen dat mind-body technieken zoals meditatie, qigong en yoga stress verlagen en een gunstige invloed hebben op onze cellen (zie Sectie 5.7).
In dit hoofdstuk duiken we dieper in het fascinerende domein van de epigenetica. We introduceren epigenetische merkers en illustreren de rol van epigenetica in embryonale ontwikkeling, leren, veroudering en stress.
5.2 Epigenetische Merkers
Epigenetische merkers zijn kleine chemische groepen die door enzymen rechtstreeks op het DNA of op histonen worden aangebracht (zie Figuur 5.3). Histonen zijn specifieke eiwitten die fungeren als spoelen die de lange DNA-molecule in een compactere vorm wikkelen. Ze kunnen dus genen toegankelijk of ontoegankelijk maken voor RNA-transcriptie en dus uiteindelijk voor de productie van eiwitten. Twee veel voorkomende types zijn
- DNA-methylatie: de directe binding van een methylgroep aan DNA27.
- Histonacetylatie: het binden van een acetylgroep aan histon-eiwitten28.
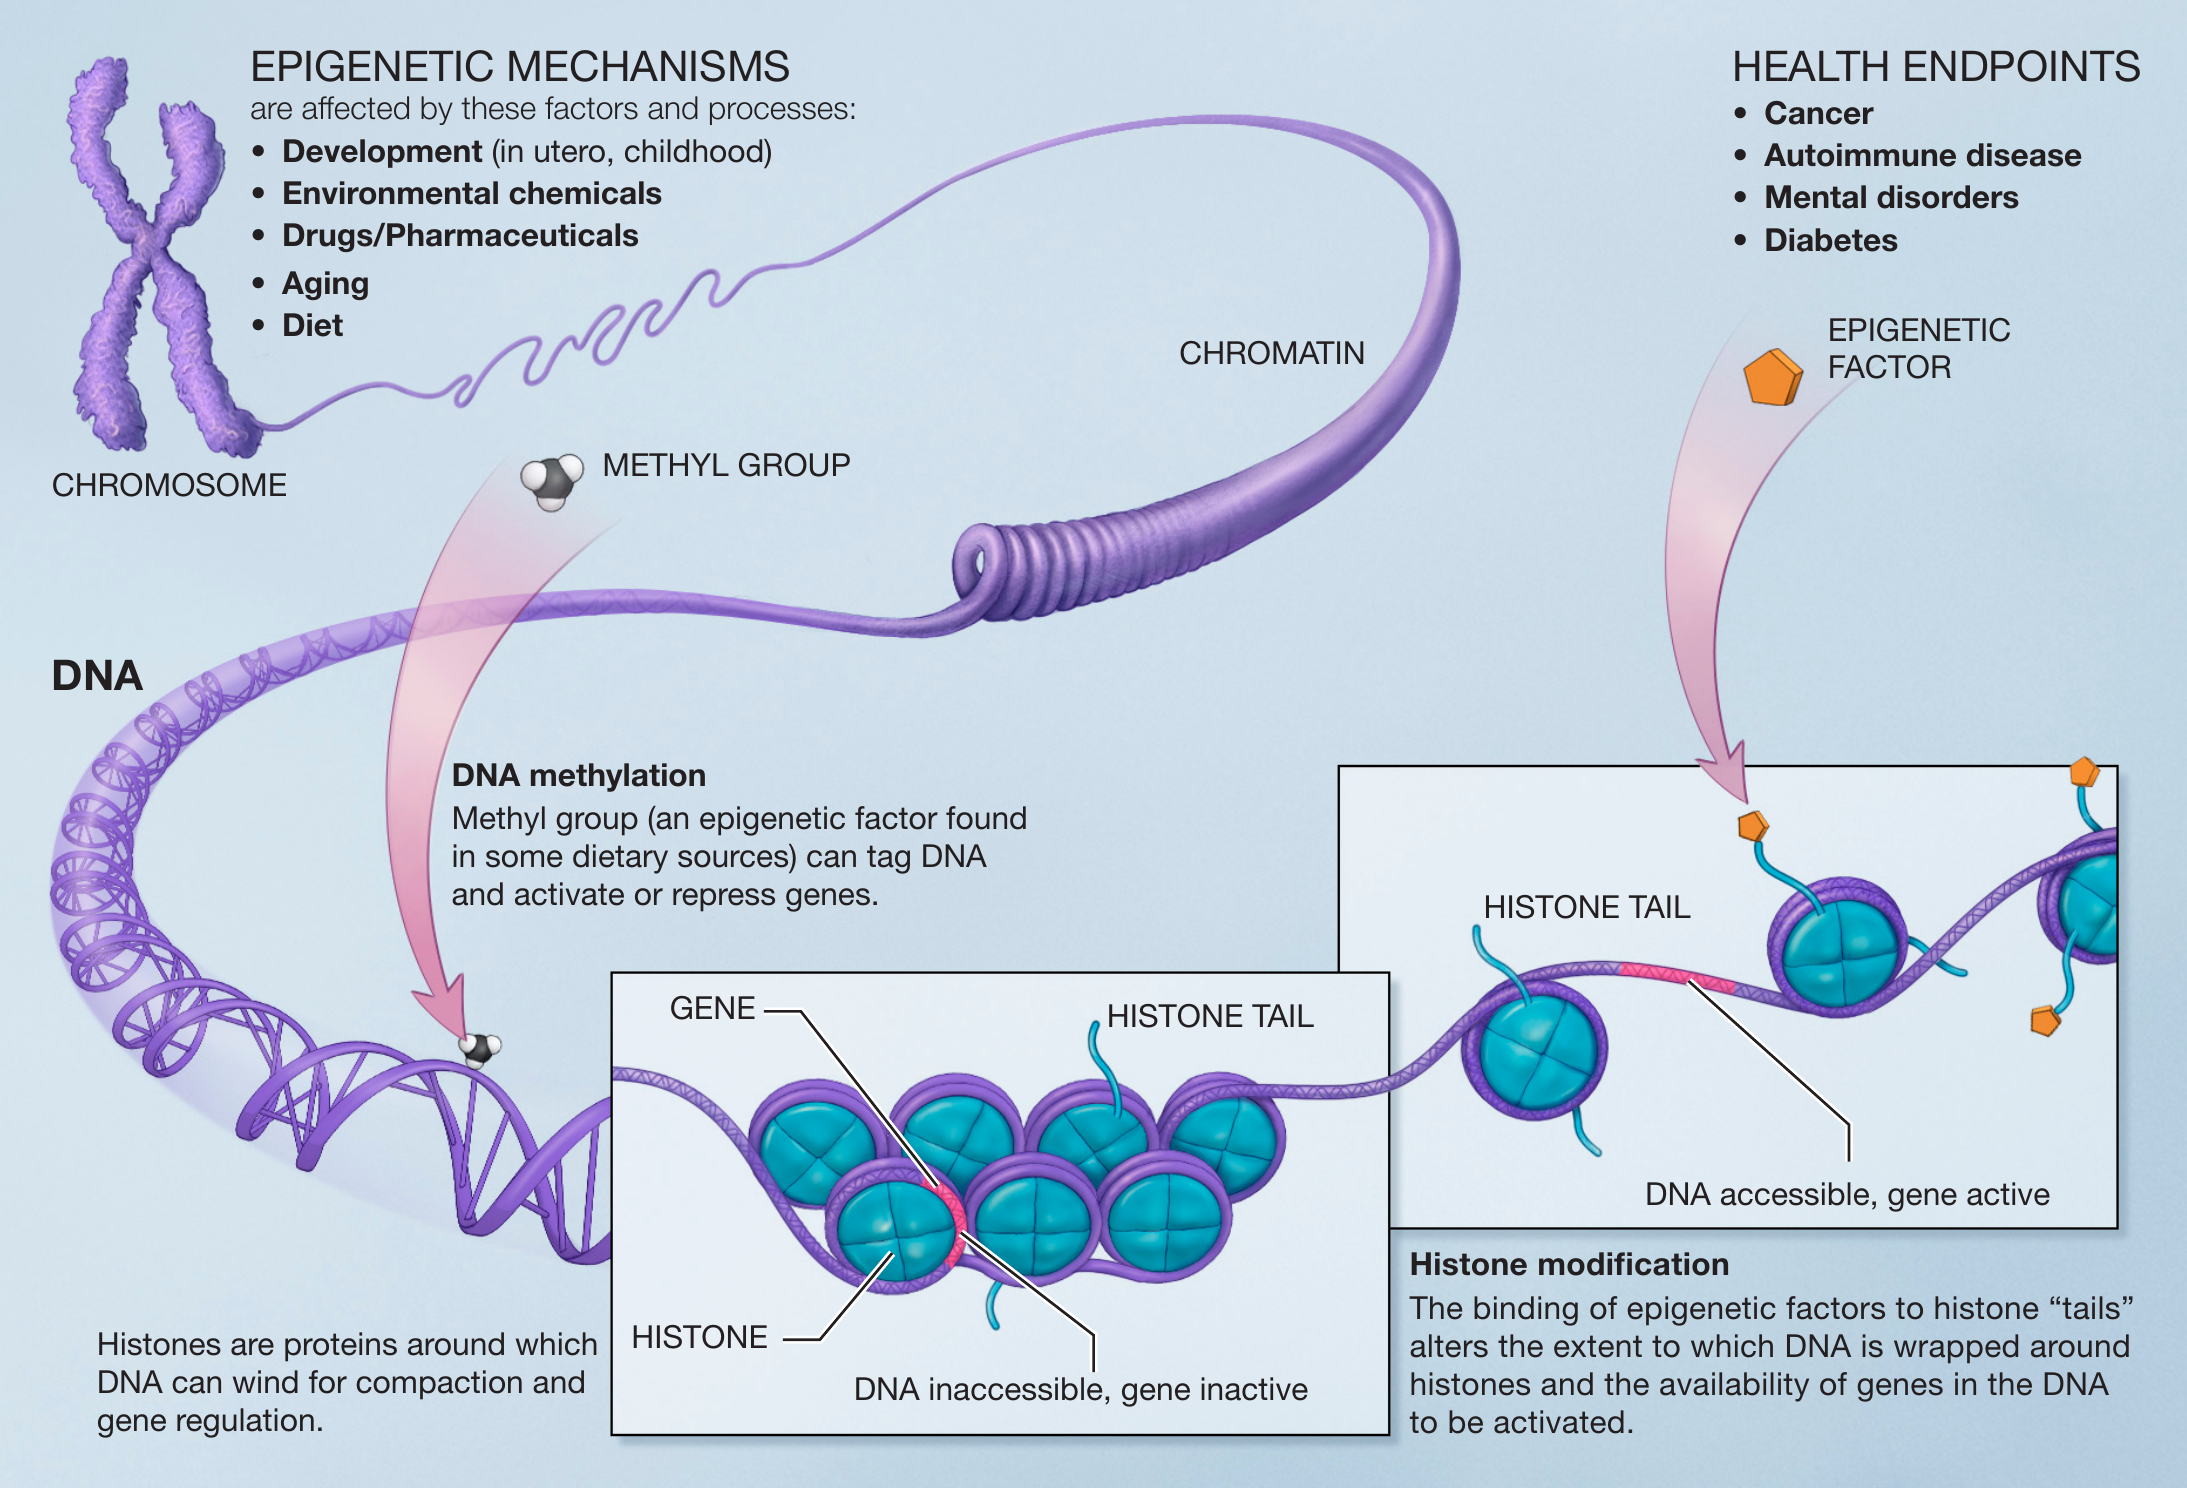
Figuur 5.3: Principes van epigenetica. Epigenetische merkers, kleine chemische groepen, worden aangebracht op het DNA en op histonen. Ze kunnen ervoor zorgen dat een gen toegankelijk of ontoegankelijk wordt voor RNA-transcriptie (Bron: NIH, Wikipedia)
Beide types kunnen de activiteit van genen beïnvloeden. Aan de ene kant onderdrukt DNA-methylatie in de promotorregio doorgaans de expressie van een gen, terwijl het verwijderen van die methylgroepen (demethylatie) de expressie weer mogelijk maakt. Aan de andere kant maakt histonacetylatie de structuur van een DNA-regio meer open en dus makkelijker toegankelijk voor transcriptie van de genen in die regio, terwijl de-acetylatie het tegenovergestelde effect heeft.
5.3 Epigenetica tijdens de Embryonale Ontwikkeling
Epigenetica speelt een belangrijke rol in de embryonale ontwikkeling (zie figuur 5.4).
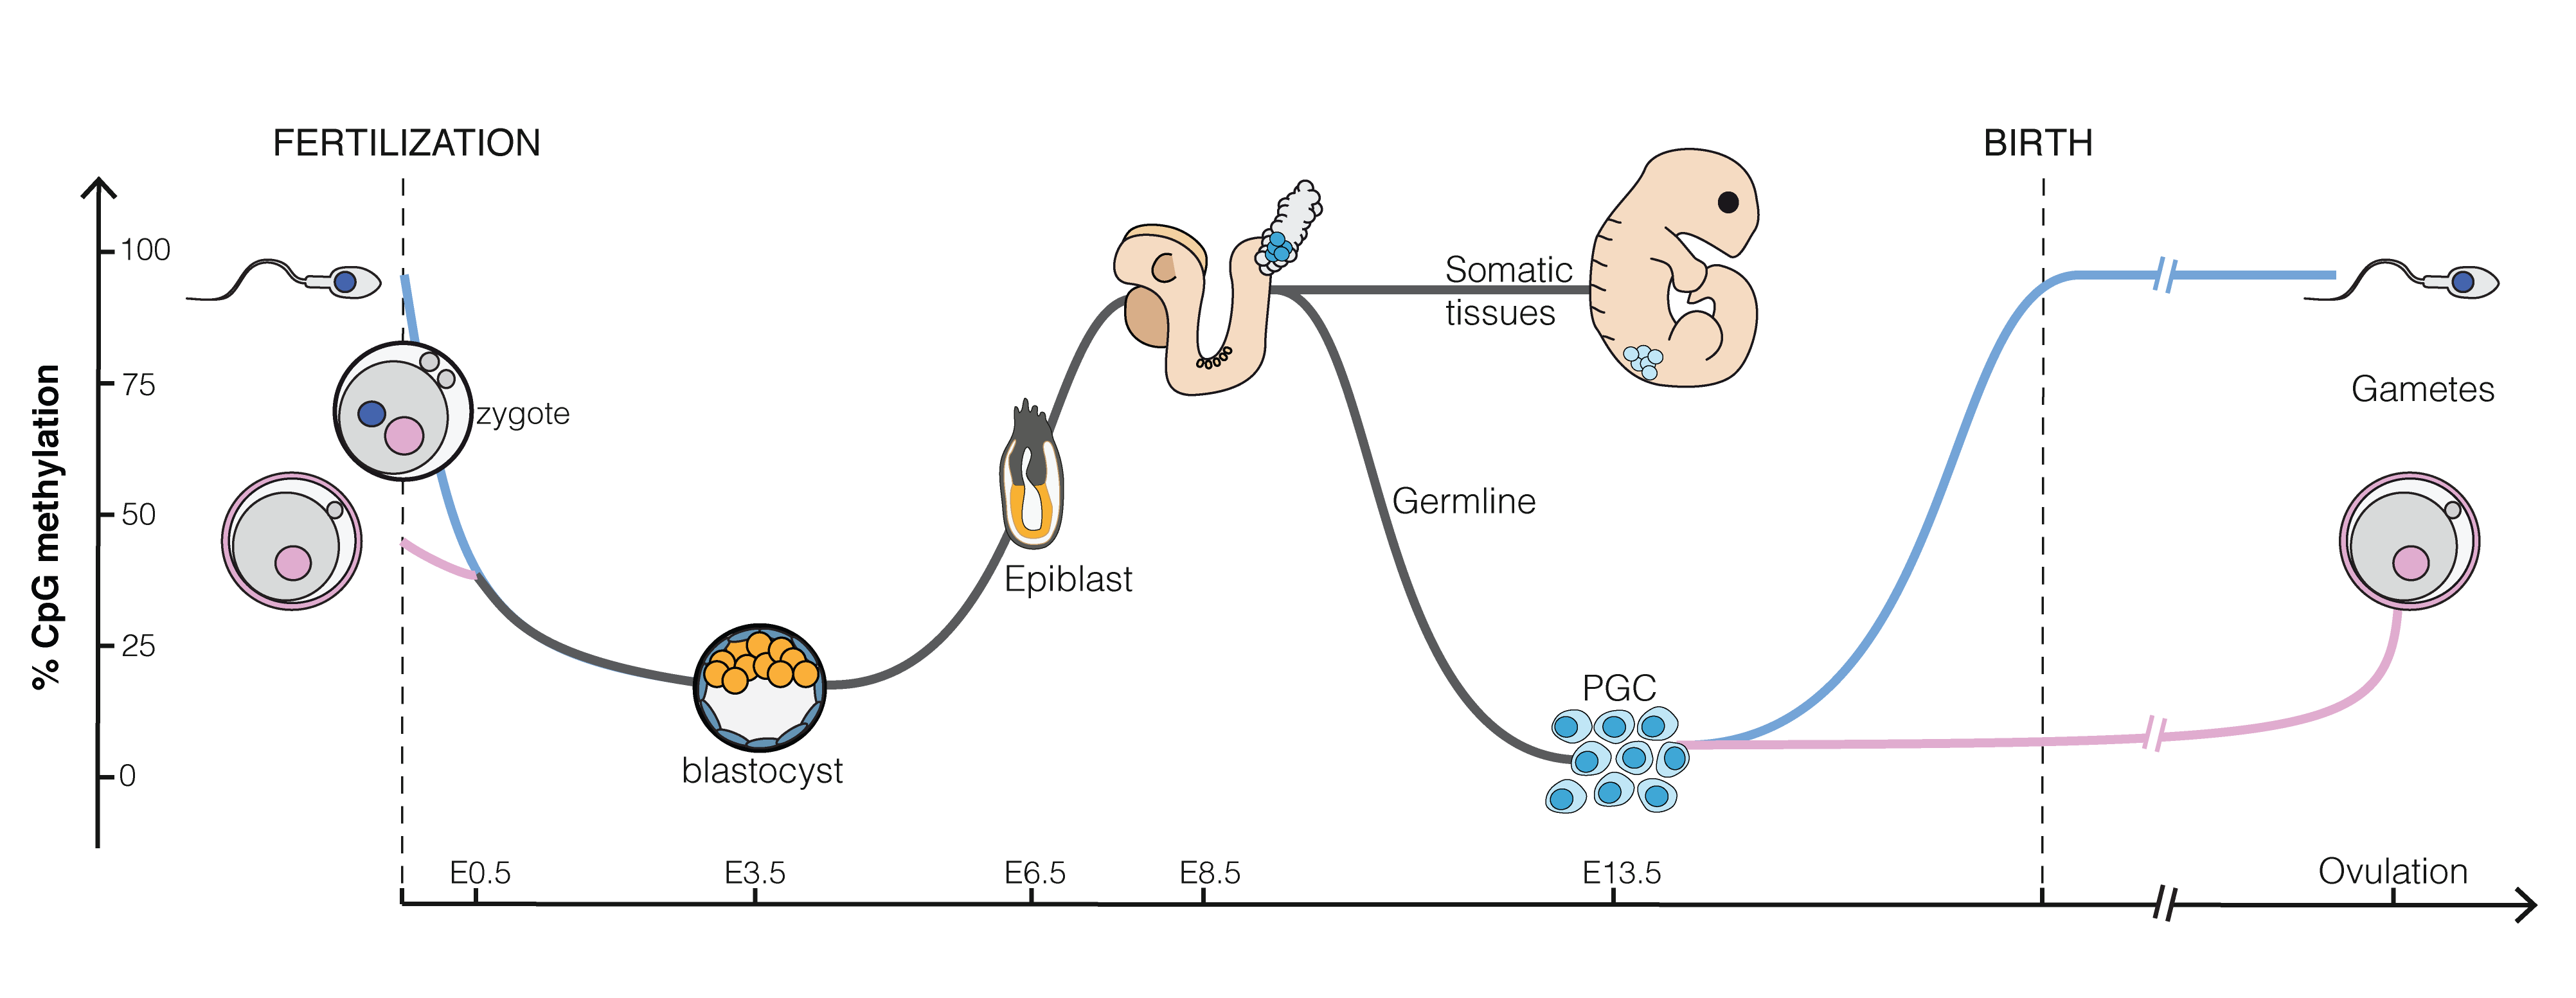
Figuur 5.4: Globale DNA-methylatie (het percentage gemethyleerde CpG’s over het hele genoom) tijdens de embryonale ontwikkeling bij de muis. Het DNA van een zaadcel is bijna volledig gemethyleerd, dat van een eicel voor ongeveer 50%. Na de bevruchting daalt de methylatiegraad sterk tot in de blastocyste. Naarmate cellen zich differentiëren en specifieke functies in weefsels krijgen, neemt de methylatiegraad weer toe. In de voorlopers van de geslachtscellen (PGC) wordt de methylatie opnieuw bijna volledig gewist en daarna weer opgebouwd (Bron: Mariuswalter, Wikipedia)
CpG’s zijn plaatsen in ons DNA waar een C gevolgd wordt door een G. Aan die C kan een methylgroep worden gebonden. Het grootste deel van de CpG’s in ons genoom is gemethyleerd. Een uitzondering zijn de CpG-eilanden: regio’s met veel CpG’s, die vaak in de promotorgebieden van genen liggen. Ongeveer 70% van onze genen heeft er een29. Die CpG-eilanden zijn meestal niet gemethyleerd, zodat het gen kan worden afgelezen. Worden ze toch gemethyleerd, dan gaat dat meestal gepaard met een vermindering van de genexpressie. In Figuur 5.4 zien we dat het DNA van een zaadcel bijna volledig gemethyleerd is, en dat van een eicel voor ongeveer 50%. Na de bevruchting daalt de methylatiegraad sterk tot in de blastocyste30. Dit is nodig om de cellen weer de eigenschap te geven dat ze zich kunnen delen en differentiëren naar alle celtypen van het ontwikkelende embryo. Wanneer de differentiatie van de cellen begint en ze zich ontwikkelen tot weefsels, neemt de methylatiegraad weer toe, zodat de cellen maar tot specifieke genen toegang hebben en meer specifieke functies krijgen. Merk op dat de methylatiestatus ook wordt doorgegeven bij celdeling, wat leidt tot invariantie van gedifferentieerde cellen: inderdaad, een spiercel blijft een spiercel na celdeling en een hersencel een hersencel, etc. Merk ook op dat de methylatie in de voorlopers van de geslachtscellen opnieuw grotendeels wordt gewist. Daardoor worden de meeste epigenetische merkers niet doorgegeven aan de volgende generatie.
5.4 Epigenetica en Leren
Deze sectie is grotendeels gebaseerd op het overzichtsartikel van Creighton et al. (2020) “Epigenetic Mechanisms of Learning and Memory: Implications for Ageing”.
In de afgelopen decennia is aangetoond dat epigenetica een belangrijke rol speelt bij de ontwikkeling van de hersenen en bij het leren.
Onderzoek met proefdieren heeft aangetoond dat de verstoring en remming van genexpressie en de vertaling naar eiwitten in de hersenen kort na een leergebeurtenis een enorme invloed heeft op langetermijnherinneringen (\(\geq24\) uur), maar niet op kortetermijnherinneringen. Deze manipulaties hadden vooral een invloed in de eerste uren na de leergebeurtenis. Dit suggereert dat de eerste geheugenconsolidatie binnen de 6 uur plaatsvindt.
Leren gebeurt meestal in golven. Genen die kort na het leren worden geactiveerd, keren binnen 24 uur terug naar hun basis expressieniveau. Dat is het tijdstip waarop een tweede golf van genexpressie wordt geactiveerd. In de tweede golf zijn genen betrokken die coderen voor epigenetische regulatoren. Het is dus bekend dat de eerste golf binnen 6 uur na het leren transcriptiefactoren opreguleert die belangrijk zijn voor het initiëren van de tweede transcriptiegolf, die nodig is om langdurige herinneringen te consolideren.
5.4.1 DNA-methylatie en Geheugen
In een groot aantal onderzoeken is aangetoond dat DNA-methylatie een belangrijke rol speelt in verschillende stadia van geheugenvorming.
Enerzijds is aangetoond dat DNA methylatie van voorbijgaande aard is, d.w.z. snel wordt geïnduceerd en daarna weer wordt omgekeerd in de eerste uren na het leren. Anderzijds is aangetoond dat stabiele veranderingen in de DNA-methylatie van de cortex tot 4 weken na het leren optreden en dat het blokkeren van corticale DNA-methylatie het geheugen aantast. Methylatie speelt dus een rol in verschillende stadia van het proces van geheugenvorming.
Er is ook aangetoond dat methylatie het geheugen beïnvloedt via verschillende mechanismen, b.v.
- Regeling van de activiteit van enhancers, dat zijn korte DNA-sequenties die de transcriptie van genen versterken
- Alternatieve splicing: uit het afgelezen RNA van een gen worden de niet-coderende stukken (intronen) weggeknipt en de coderende stukken (exonen) aan elkaar gezet. Door bepaalde exonen al dan niet mee te nemen, kunnen van eenzelfde gen verschillende eiwitten worden gemaakt. Methylatie kan dus beïnvloeden welk eiwit er van een bepaald gen wordt geproduceerd.
- Expressie van micro RNA’s, korte niet-coderende RNA’s, die biologisch actief zijn.
Er is veel literatuur rond de rol van methylatie bij leren: er is aangetoond dat tijdens het leren methylatie voorkomt in de hippocampus, prefrontale cortex en de amygdala van de hersenen (Figuur 5.5).
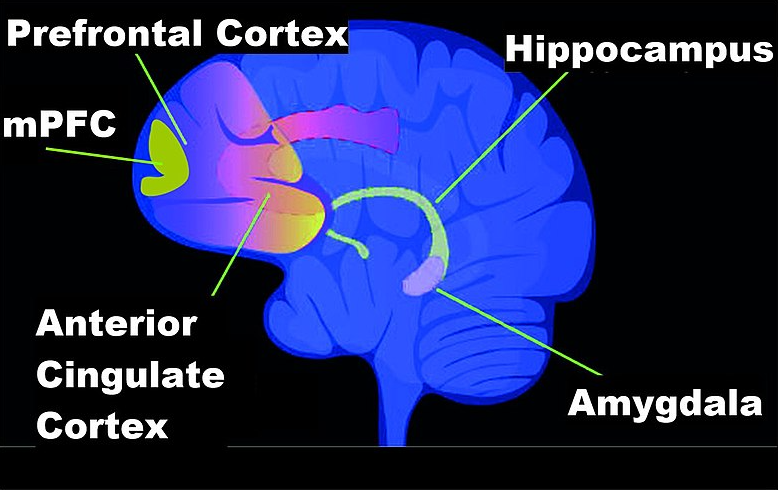
Figuur 5.5: Hersengebieden betrokken bij geheugenvorming. (Bron: Wikipedia)
5.4.2 Histonmodificaties en Geheugen
Een andere vorm van epigenetische regulatie gebeurt via de modificatie van histonen, de eiwitten die fungeren als spoelen waar de lange DNA-molecule omheen is gewikkeld. De histonmodificaties beïnvloeden de toegankelijkheid van een DNA-regio.
Er is aangetoond dat histonmodificaties met epigenetische merkers vooral belangrijk zijn in de beginfase van de geheugenconsolidatie. Ze worden snel gemodificeerd waarna ze terugkeren naar hun basisniveau. Deze modificaties veroorzaken “het afwikkelen of oprollen van het DNA van of rond de histonen” waardoor bepaalde genen toegankelijk of ontoegankelijk worden voor expressie.
Epigenetische histon-merkers lijken de transcriptionele gevoeligheid voor externe prikkels te reguleren. Er is bijvoorbeeld aangetoond dat histonacetylatie, die het DNA toegankelijker maakt, de expressie verhoogt van genen die door leren worden geïnduceerd. En histonacetylatie blijkt vooral belangrijk te zijn voor de regulatie van de geheugensterkte.
Recent onderzoek heeft dus het enorme belang aangetoond van epigenetica voor de ontwikkeling van de hersenen en het leren. Het gebied van neuro-epigenetica staat nog in de kinderschoenen en er blijven momenteel nog vele vragen onbeantwoord.
5.5 Epigenetica en Veroudering
Epigenetica wordt ook sterk aangestuurd door ecofactoren. Dat wordt goed geïllustreerd bij een eeneiige tweeling. Beide personen van de tweeling hebben bijna exact hetzelfde genoom31. Hoe ouder ze worden, hoe makkelijker het wordt om ze uit elkaar te houden. Dat komt onder meer door epigenetische veranderingen. Fraga et al. (2005) toonden aan dat eeneiige tweelingen op jonge leeftijd epigenetisch niet van elkaar te onderscheiden zijn, maar dat er op latere leeftijd opvallende verschillen ontstaan in hun DNA-methylatie en histonacetylatie, die ook hun genexpressie beïnvloeden. Die verschillen worden mee veroorzaakt door de verschillende omgevingen en levensstijlen waaraan ze zijn blootgesteld. Een zichtbaar voorbeeld van hoe de omgeving tweelingen uit elkaar doet groeien, is het verschil in huidveroudering tussen tweelingen die op een andere manier aan UV-straling zijn blootgesteld (Figuur 5.6).
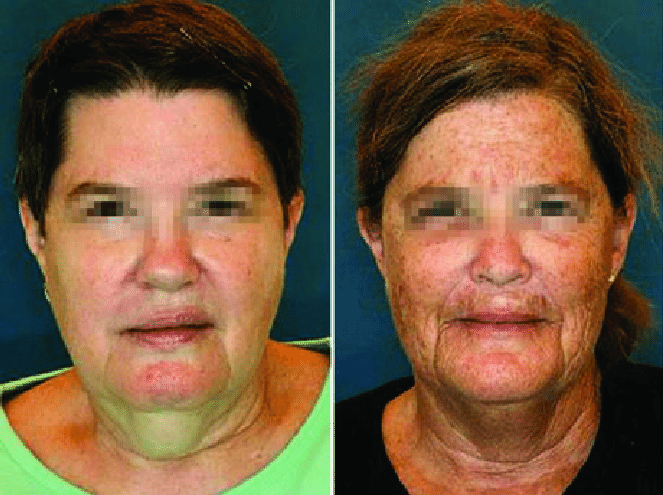
Figuur 5.6: Het verschil in huidveroudering tussen broers of zussen van een eeneiige tweeling als gevolg van een verschil in blootstelling aan UV-straling. Dat verschil ontstaat door een combinatie van DNA-schade, afbraak van collageen en epigenetische veranderingen (Schwab and Hogenson 2017)
Een ander tweelingenonderzoek toonde een verband aan tussen lichaamsbeweging en epigenetische merkers die geassocieerd zijn met een verminderde ontwikkeling van het metabool syndroom (Duncan et al. 2022). Door eeneiige tweelingen te bestuderen waarvan de ene persoon fysiek actiever was dan de andere, minimaliseerden de onderzoekers de genetische verschillen tussen actieve en inactieve deelnemers in het onderzoek. Door deze opzet konden ze genetische regio’s ontdekken die verschillend gemethyleerd waren tussen actieve en inactieve deelnemers, terwijl hun genetische achtergrond gelijk bleef. De gevonden veranderingen in methylatie zijn geassocieerd met genen waarvan bekend is dat ze betrokken zijn bij fysieke activiteit en obesitas.
Veroudering en een lang leven worden beïnvloed door genetische, epigenetische en omgevingsfactoren tijdens de ontwikkeling, groei, volwassenheid en oudere leeftijdsstadia. Veroudering en een lang leven worden slechts voor een deel bepaald door onze genen. Het niet-genetische deel is echter niet automatisch epigenetisch: ook omgeving, levensstijl en toeval spelen een rol. Epigenetische veranderingen zijn wel een belangrijk mechanisme waarlangs omgeving en levensstijl kunnen inwerken op veroudering (Adwan-Shekhidem and Atzmon 2018). Er is inderdaad aangetoond dat de methylatiegraad op een beperkt aantal plaatsen in het DNA opmerkelijk goed de chronologische leeftijd voorspelt: de zogenaamde epigenetische klok (Horvath 2013). Bovendien kan het verschil tussen die epigenetische leeftijd en de werkelijke leeftijd iets zeggen over hoe snel iemand biologisch veroudert. Veroudering blijkt gepaard te gaan met ingrijpende veranderingen in het epigenetische landschap, die leiden tot veranderingen in genexpressie en genoomarchitectuur.
Er is aangetoond dat epigenetica en telomeerlengte een belangrijke rol spelen bij veroudering.
Telomeren zijn regio’s van repetitieve nucleotidesequenties die geassocieerd worden met gespecialiseerde eiwitten aan de uiteinden van onze chromosomen, zie Figuur 5.7. Bij elke celdeling worden de telomeren korter. Dat korter worden van telomeren wordt in verband gebracht met veroudering van cellen, weefsels en organen.
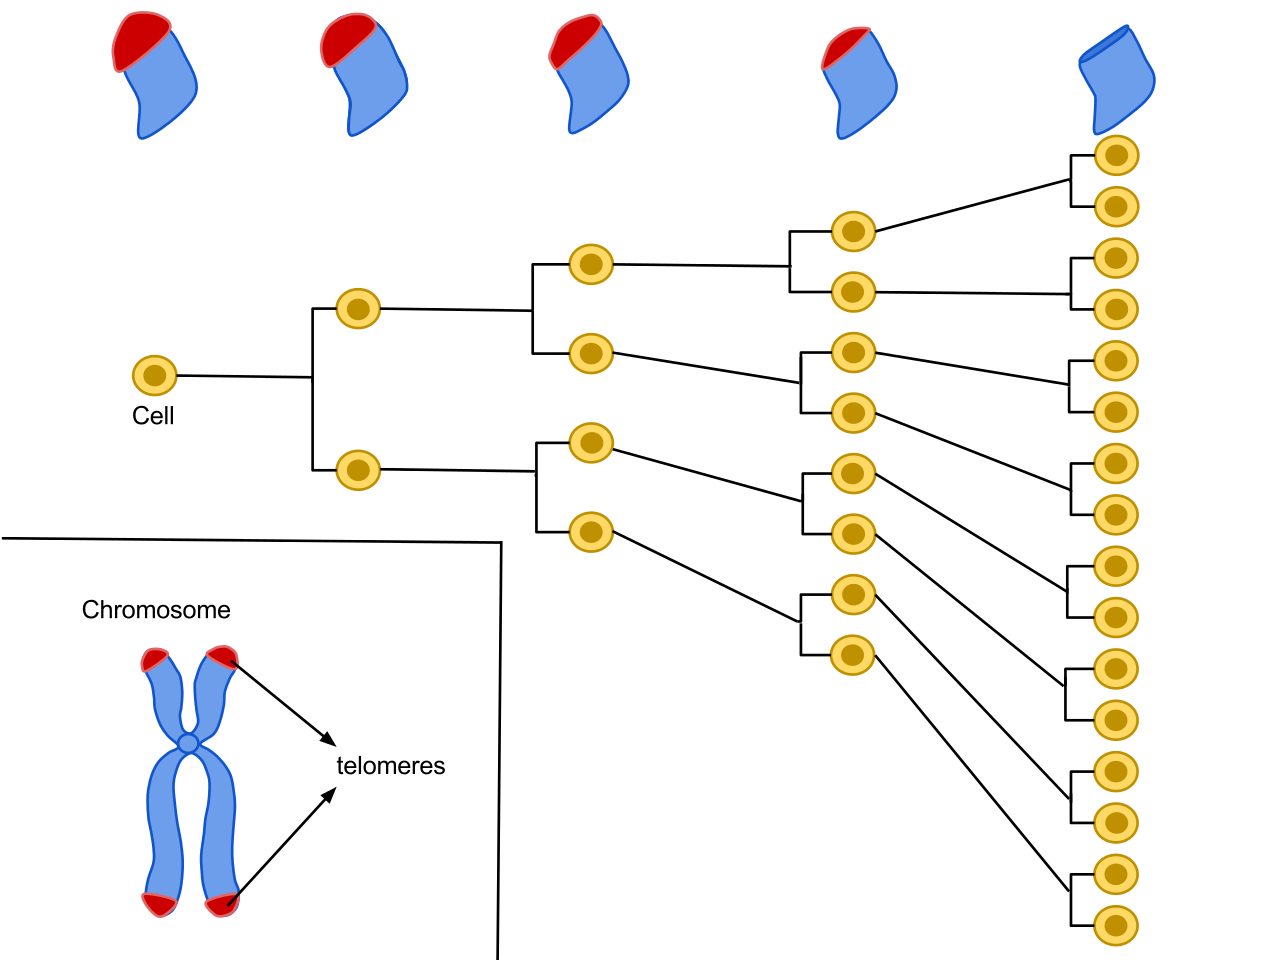
Figuur 5.7: Telomeren zijn repetitieve nucleotidesequenties aan het einde van een chromosoom. Telkens wanneer een cel zich deelt, worden de telomeren aan het uiteinde van het chromosoom kleiner. Menselijke cellen die in het laboratorium worden gekweekt, kunnen zich ongeveer 50 à 70 keer delen voordat ze definitief stoppen met delen (Bron: Wikipedia).
Blackburn and Epel (2017) gebruiken de plastic uiteinden van schoenveters als analogie voor telomeren. Als deze uiteinden korter worden, kan de schoenveter gaan rafelen. Dat is net zo bij de telomeren, als die te kort worden, loopt de integriteit van het chromosoom gevaar bij de volgende celdeling. Daarom gaat een cel met te korte telomeren over in senescentie: ze stopt definitief met delen. Zo’n senescente cel sterft niet meteen, maar kan nog lang blijven bestaan en daarbij ontstekingsbevorderende stoffen afscheiden, wat bijdraagt aan de veroudering van het weefsel.
Maar door een enzymcomplex dat telomerase heet, kunnen de telomeren worden verlengd. In de schoenveter analogie is telomerase dus de lijm waarmee we de plastic kapjes van een schoenveter kunnen herstellen.
Er zijn steeds meer aanwijzingen dat telomeren een rol spelen in ouderdomsprocessen. Mutaties in telomerase en telomeergenen die een verhoogde verkorting van telomeren veroorzaken, komen voor bij patiënten met leeftijdsgerelateerde ziekten, zoals degeneratief orgaanfalen en het vatbaarder zijn voor kanker. Bovendien zijn er oorzakelijke verbanden tussen telomeerverlies, cellulaire senescentie (het blijvend stoppen van celdeling) en veroudering vastgesteld bij genetisch gemodificeerde diermodellen (Adwan-Shekhidem and Atzmon 2018).
Epigenetica blijkt ook een belangrijke rol te spelen bij telomeeronderhoud (Adwan-Shekhidem and Atzmon 2018). Meerdere studies hebben aangetoond dat telomerische en subtelomerische regio’s histonmodificaties bevatten en dat het subtelomere DNA methylatie kan ondergaan. Hierbij induceert de epigenetische modificatie geen veranderingen in de expressie van genen, maar beïnvloedt ze wel de telomeerlengte of telomeerstructuur. Bovendien is aangetoond dat genen die betrokken zijn bij de productie van telomerase ook d.m.v. methylatie worden gereguleerd.
5.6 Epigenetica en Verrijkte Omgeving
De omvangrijke wetenschappelijke literatuur over de invloed van verrijkte omgevingen op neuroplasticiteit en hersenveroudering bij knaagdieren is ook heel interessant om de werking van Biodanza beter te begrijpen.
Uit de wetenschappelijke literatuur wordt de achteruitgang van hersenfuncties tijdens het ouder worden in verband gebracht met epigenetische veranderingen. De hippocampus speelt bijvoorbeeld een belangrijke rol bij de consolidatie van informatie uit het kortetermijngeheugen naar het langetermijngeheugen. Muizenstudies hebben bijvoorbeeld aangetoond dat een verrijkte omgeving een belangrijke invloed heeft op het epigenetische landschap van de hippocampus (zoals b.v. Zocher et al. (2021), en Griñan-Ferré et al. (2016)).
De verrijkte omgeving voor de knaagdieren bestond uit het gebruik van grote kooien die ze in grote groepen kunnen exploreren. De kooien zijn uitgerust met speeltjes die regelmatig worden verplaatst. De verrijkte omgeving vergroot dus fysieke, cognitieve, zintuiglijke en sociale stimulatie in vergelijking met conventionele labocondities.
Zocher et al. (2021) toonden aan dat de verrijkte omgeving veroudering-geïnduceerde CpG-hypomethylering tegenging op doelsites van het methyl-CpG-bindende eiwit Mecp2, dat cruciaal is voor de neurale functie. Van de genen die in de studie werden gevonden, is in de literatuur bekend dat ze een rol spelen bij neurale plasticiteit, neurale celcommunicatie en neurogenese32 in de hippocampus van volwassen dieren. Bovendien is geweten dat de ontregeling van deze genen verband houdt met leeftijdsgerelateerde cognitieve achteruitgang in het menselijk brein.
Het onderzoek van Griñan-Ferré et al. (2016) bij SAMP8 muizen, een muizenstam die wordt gekenmerkt door leeftijdsgerelateerde achteruitgang die invloed heeft op leren en geheugen, toonde aan dat een verrijkte omgeving hun cognitieve achteruitgang verminderde. De verrijkte omgeving verminderde de oxidatieve stress en ontsteking in de hippocampus bij SAMP8 muizen en dit eveneens door het induceren van epigenetische veranderingen.
Deze onderzoeken benadrukten onder andere de gunstige effecten van een verrijkte omgeving op de plasticiteit van de hippocampus via DNA-methylering en toonden aan dat specifieke aspecten van hersenveroudering kunnen worden tegengegaan door lifestyle interventies.
5.7 Epigenetica en Stress
Epigenetica blijkt ook een belangrijk mechanisme te zijn waardoor stressoren kunnen interageren met het genoom. Dit kan leiden tot stabiele veranderingen in de verpakking van het DNA (het chromatine), in genexpressie en in gedrag (zie b.v. Park et al. (2019)).
Interessant is dat stress en depressie voornamelijk zijn geassocieerd met epigenetische veranderingen in genen die betrokken zijn bij het mediëren van veerkracht, kwetsbaarheid voor stress en genen die gerelateerd zijn met de stressrespons (b.v. Park et al. (2019)).
In hun boek “The Telomere Effect” geven Blackburn and Epel (2017) een overzicht van hun studies naar de impact van stress op telomeerlengte en telomeraseactiviteit. Ze geven tot de verbeelding sprekende voorbeelden en onderzoeksresultaten die onderbouwen dat verouderingseffecten sterk worden beïnvloed door stress tijdens de kindertijd en door langdurige stress op latere leeftijd. En dat via de telomeraseactiviteit en de telomeerlengte, die, zoals beschreven in Sectie 5.5, onder meer door epigenetische mechanismen worden beïnvloed.
Blackburn and Epel (2017) bespreken ook studies waarin werd aangetoond dat mind-body technieken zoals meditatie, qigong en yoga stressverlagend werken, positieve effecten hebben op ons welzijn, ontstekingen kunnen temperen en de activiteit van telomerase kunnen verhogen. Veel van deze studies zijn nog klein en de gemeten effecten bescheiden, maar de resultaten zijn in lijn met de heilzame effecten die Rolando Toro voor ogen had met zijn Systeem van Biodanza.
5.8 Ontogenese in het Biodanza-Model
Rolando Toro veronderstelde dus dat epigenetica een belangrijke drijvende kracht is voor de ontogenese in zijn Biodanza-systeem. Of om het met een quote van Rolando te zeggen “Es que en la epigénesis se permite o no la expresión de los genes existentes” (Montanari and Sant’Anna 2023). Of, “het is dus door epigenetica dat de expressie van bestaande genen wel of niet mogelijk is”.
Onze ontogenese, of de vorming van ons fenotype, is dus niet onmiddellijk het resultaat van ons genoom, maar van het modulatiemechanisme van ons genoom: de activatie en inhibitie van de expressie van de genen die we hebben geërfd van onze biologische ouders. De moederzorgstudies bij ratten uit het begin van dit hoofdstuk sluiten bovendien mooi aan bij wat Rolando protovivencia noemde (zie Hoofdstuk 1): de eerste ervaringen van een pasgeborene met aanraking, voeding en bescherming kunnen een blijvend biologisch spoor nalaten in hoe we op stress reageren.
Rolando betoogde verder dat “We hebben veel genen die niet goed zijn (…) Het is de epigenetica, door de verrijkte omgeving, die de expressie blokkeert of toestaat van sommige aspecten van de genetische code (…) Soms blokkeert de omgeving de kwaadaardige genen niet, dan verschijnt de pathologie” (Montanari and Sant’Anna 2023). Recent onderzoek nuanceert dat beeld van ‘goede’ en ‘slechte’ genen, op een manier die Rolando’s intuïtie nog versterkt. Volgens de theorie van de differentiële gevoeligheid maken sommige genetische varianten mensen vooral gevoeliger voor hun omgeving, in beide richtingen: in een ongunstige omgeving doen ze het slechter, maar in een ondersteunende omgeving bloeien ze net extra op (Belsky and Pluess 2009). Wie het meest vatbaar is voor een toxische omgeving, heeft dus mogelijk ook het meest baat bij een verrijkte omgeving. Rolando Toro veronderstelde dus dat het beoefenen van Biodanza gezien kan worden als een manier voor het regelmatig toedienen van prikkels door middel van vivencia, die veranderingen en herstel teweegbrengen die nodig zijn om ons biologische systeem weer in balans te brengen van de schade die veroorzaakt is door onze toxische ervaringen en de aanvallen van ziekteverwekkers (Montanari and Sant’Anna 2023).
In dit hoofdstuk hebben we de biologische invalshoek van ontogenese geïntroduceerd waarmee we de biologische aspecten van het Biodanza-Model afsluiten. Merk nogmaals op dat de wetenschappelijke bronnen waar in dit hoofdstuk naar wordt verwezen ons kunnen helpen om Rolando Toro’s hypothese te begrijpen dat epigenetica betrokken is bij de ontogenese van Biodanza. Ze kunnen echter niet worden gezien als wetenschappelijk bewijs voor deze hypothese, aangezien er tot op heden geen empirisch onderzoek is uitgevoerd naar de epigenetische effecten van Biodanza.
In dit hoofdstuk hebben we ons vooral gefocust op de biologische component van ontogenese. Het is echter niet onze bedoeling om ontogenese in het Biodanza-Model te reduceren tot enkel biologische aspecten. De biologische ontwikkeling van een individu vindt namelijk plaats in een groter veld. Er is ook een belangrijke sociale, psychologische en emotionele component bij betrokken omdat een belangrijk deel van het menselijk leven zich afspeelt in het sociaal-symbolische domein.
Dit grotere en belangrijke kruispunt van de levenswetenschappen, fysiologie, antropologie, sociologie, psychologie, kunst en mystiek valt buiten het bestek van deze monografie. Het is in dit grotere veld waarin Rolando zich bewoog toen hij zijn systeem van Biodanza ontwikkelde.
References
behalve onze voortplantingscellen↩︎
alle genetische informatie of DNA van een cel of organisme↩︎
neuroplasticiteit is het vermogen van het zenuwstelsel om zijn activiteit te veranderen in reactie op intrinsieke of extrinsieke stimuli door het reorganiseren van zijn structuur, functies of verbindingen, bijvoorbeeld bij het leren, maar ook bij herstel na hersenletsel↩︎
De hippocampus is een belangrijk onderdeel van de hersenen. Het speelt een belangrijke rol bij leren en geheugenconsolidatie↩︎
Een methylgroep (-CH\(_3\)) bestaat uit één koolstof en drie waterstofatomen↩︎
Een acetylgroep (-CO-CH\(_3\)) bestaat uit twee koolstof-, één zuurstof- en drie waterstofatomen↩︎
Een promotor is een DNA-sequentie waaraan eiwitten zich binden om transcriptie van het gen stroomafwaarts van de promotor te starten↩︎
een vroeg stadium van de embryonale ontwikkeling, ongeveer vijf dagen na de bevruchting↩︎
Een eeneiige tweeling heeft bijna exact hetzelfde genoom, alleen hele kleine verschillen die zijn opgebouwd in de baarmoeder↩︎
neurogenese: proces waarbij nieuwe neuronen worden gevormd↩︎